高三二轮复习:2026年诺奖微专题—光门控通道与光遗传(学案)
- 2026-10-10 02:26:18
高三生物学二轮微专题:光门控通道与光遗传学
——从 2026 年诺贝尔生理学或医学奖说起
学校 | 班级 | 姓名 | |||
学号 | 时间 | 得分 |
、学习目标
1.比较载体蛋白与通道蛋白,说明通道蛋白的结构特点、转运方式与功能特性。
2.结合神经元兴奋的产生,说明离子通道的四种控制方式。
3.以 ChR2、NpHR 为例,说出新型光控通道的特点与优势,理解“光遗传学”的含义。
4.梳理光遗传学的发现历程及其科学意义(从“相关”走向“因果”)。
5.综合运用基因工程与 Cre-loxP 条件表达系统,设计光控表达载体,落实对照与单一变量原则。
二、情境导入
北京时间 2026 年 10 月 5 日,瑞典卡罗琳医学院宣布,将 2026 年诺贝尔生理学或医学奖授予美国斯坦福大学的卡尔·戴塞洛斯(Karl Deisseroth)、德国柏林洪堡大学的彼得·黑格曼(Peter Hegemann)和德国维尔茨堡大学的格奥尔格·纳格尔(Georg Nagel),获奖理由是“在光门控离子通道和光遗传学方面的发现”。
用诺奖委员会的话说,这项成果让科学家能够在活体大脑中“打开”或“关闭”单个神经细胞的活动。而这条通往诺奖的道路,起点竟是一株池塘里的绿藻。
卡尔·戴塞洛斯 斯坦福大学 |
彼得·黑格曼 柏林洪堡大学 |
格奥尔格·纳格尔 维尔茨堡大学 |
【四站历程】① 20 世纪 90 年代初,黑格曼发现莱茵衣藻被照亮后仅约半毫秒就产生电脉冲,远快于动物感光系统,由此提出“感光装置与离子通道可能是同一个蛋白”的假说;② 千禧年之交衣藻基因图谱公布,黑格曼找到两个候选基因,纳格尔将它们在爪蟾卵母细胞中表达并用光照射、记录电流,证实其是光门控离子通道;③ 2002、2003 年相继鉴定出通道视紫红质 ChR1、ChR2,且把该基因转入其他细胞后细胞也“怕光”;④ 戴塞洛斯把 ChR2 基因转入神经元,用光精确激活或抑制神经细胞,创立光遗传学。
考点 1 载体蛋白与通道蛋白
比较项目 | 载体蛋白 | 通道蛋白 |
转运方式 | ||
是否与转运物质结合 | ||
是否发生构象改变 | ||
转运的物质(举一例) | ||
是否顺浓度梯度 | ||
是否消耗ATP | ||
有无饱和现象 |
小结:通道蛋白介导的运输属于 ,顺浓度梯度、(需要/不需要)消耗 ATP;水分子经水通道蛋白(AQP)的跨膜运输也属于协助扩散。
考点 2 离子通道的控制方式
类型 | 开放(控制)条件 | 实例 |
电压门控 | 轴突上参与动作电位的Na + 、 K + 通道 | |
配体门控 | 突触后膜上接受神经递质的Na + 通道 | |
机械门控 | 内耳毛细胞、皮肤压力感受器 | |
光门控 | ChR2 (蓝光)、 NpHR (黄光) |
回归教材:静息电位主要由 外流维持,表现为“外正内负”;受到刺激时 Na+大量内流,膜电位翻转为“内正外负”,这一过程叫,达到阈电位即爆发 。一句话——膜上离子通道的开闭,直接决定神经元是否兴奋。
考点 3 新型光控通道的特点与优势
ChR2(通道视紫红质-2):一种 次跨膜的膜蛋白,内部结合感光分子 ;蓝光(≈470 nm)照射时视黄醛构象改变,中央孔道张开,细胞外(阳离子/阴离子)顺电化学梯度涌入,使神经元(去极化/超极化),达到阈值即触发动作电位;光一停,通道随即关闭。
NpHR(嗜盐菌视紫红质):黄光(≈580 nm)照射时把 泵入细胞,使膜电位更负(),神经元活动被“关闭”。二者表达在同一神经元中,即可实现“蓝光兴奋、黄光抑制”的双色双向控制。
工具蛋白 | 光源与波长 | 转运的离子 | 对神经元的作用 |
ChR2 | 蓝光≈470 nm | ||
NpHR | 黄光≈580 nm | ||
Arch / ArchT | 黄绿光 | H + 泵出细胞 | |
Chrimson等 | 红光 | 穿透更深,兴奋(开) |
优势(与旧方法比较):电刺激太粗,会激活一大片细胞;损毁或药理手段慢、不特异、难做因果;成像只能看到“哪里亮”,不等于“谁导致行为”。光遗传学同时具备 ① 特异性(只控制某一类细胞)与 ② 精度(毫秒级,说开就开、说停就停)。
考点 4 光遗传学的发现过程与意义
1.发现过程:从一曲看似“没什么用”的问题出发——绿藻为何追光?由“衣藻感光只需半毫秒”的疑惑,到在爪蟾卵母细胞中验证光门控通道,再到把 ChR2 基因转入神经元、用光控制神经活动,最终创立光遗传学。
2.意义:不再只是“观察”脑活动,而是直接操纵神经元并观察行为变化,从而建立“某群神经元 → 某种功能”的(相关/因果)链。
3.经典证据:2012 年“恐惧记忆”实验——先让小鼠经历恐惧并标记编码该记忆的神经元集群,再在安全环境中用光重新激活这一群神经元,小鼠立即表现出恐惧反应,说明特定神经元集群就是记忆的物质载体之一。
考点 5 如何构建光控表达载体
(1)基因工程的基本流程:目的基因的获取(ChR2 基因)→ → 将目的基因导入 → 目的基因的。
(2)光控表达载体应含的元件:启动子(决定表达位置,如脑组织特异启动子 M)、目的基因(ChR2)、、标记基因(荧光蛋白如 EYFP/mCherry,便于观察表达范围)。
(3)Cre-loxP 条件表达系统——“给谁装开关”:
·两件零件:Cre 重组酶(来自 P1 噬菌体,像只认一种锁的分子剪刀,专门识别序列,无需辅助因子)+ loxP 位点(全长 34 bp,两端为 13 bp 序列,中间夹 8 bp 非对称间隔区)。
·方向决定结局:两个 loxP 同向时,中间的 DNA 被(敲除);反向时,中间 DNA 发生(倒位);分处两条染色体时可发生片段交换或易位。
·LSL 表达盒(loxP-STOP-loxP):目的基因前放转录终止序列 STOP,两侧用同向 loxP 夹住;无 Cre 时转录到 STOP 即止,目的基因(表达/不表达);有 Cre 时 STOP 被剪掉,目的基因才被启动表达。
·DIO 策略:把目的基因“倒着”装入病毒载体,两侧用两对互不相容的 lox 位点;只有当细胞中存在 Cre 时,序列才被翻转到正确方向并锁定,因为两个 lox 位点互不兼容,翻转后不会被翻回,表达因此稳定。
·一句话分工:基因手段(Cre-loxP)决定“给谁装开关”,光决定“”。
·
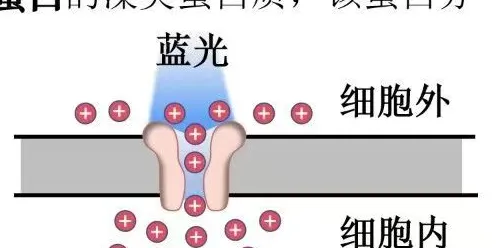
图 1 光敏通道蛋白在细胞膜上的工作示意
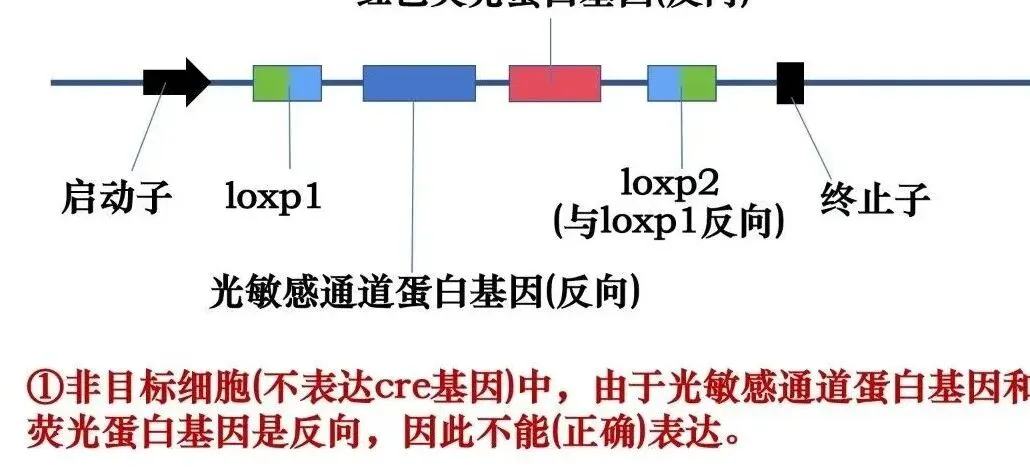
图 2 重组 AAV 载体:目的基因“反向”装入,两侧为 loxP,靠 Cre 翻转后才表达
(一)选择题
1.Cre-loxP 系统中,loxP 是一段具有方向性的特殊 DNA 序列,Cre 酶可识别 DNA 分子上两个相同的 loxP 位点,并将两个位点之间的 DNA 片段切割后环化、降解。下列关于 Cre 酶及 loxP 的叙述,错误的是( )
A.Cre 酶兼具限制酶和 DNA 连接酶的功能
B.loxP 位点的方向性由其中间 8 bp 的间隔序列决定
C.两个 loxP 位点同向时,其间的目的基因被切除,可实现基因敲除
D.两个 loxP 位点反向时,其间的目的基因一定被切除
2.研究表明,约 80% 的结直肠癌患者 A 基因(抑癌基因)突变产生 A-基因,A-表达的错误蛋白不行使正常功能,还会干扰正常 A 蛋白发挥作用。科研人员利用 Cre-loxP 系统构建了 A 基因杂合突变的结直肠癌模型鼠,并只允许突变基因 A- 在该鼠肠上皮细胞中表达。下列叙述错误的是( )
A.在启动子与目标基因间插入 loxP-Stop-loxP 序列后,目标基因不表达
B.Cre 酶可通过识别 loxP 位点敲除 Stop 序列,使目标基因得以表达
C.可将“A/A-基因启动子-loxP-Stop-loxP-A-基因”导入一只野生型鼠
D.只要后代中检测到 Cre 酶,即说明 A- 基因已在肠上皮细胞中表达
(二)非选择题
3.自然杀伤细胞(NK 细胞)能非特异性识别肿瘤细胞。为探究 NK 细胞表面 CD226 分子在小鼠溃疡性结肠炎中的作用,研究人员利用 Cre-loxP 系统敲除 NK 细胞上的 CD226 分子,获得 NK 特异性 CD226 基因敲除鼠。已知 NCR1 是一种主要在 NK 细胞表达的细胞膜上的免疫受体。
(1)Cre-loxP 系统由 loxP 序列和 Cre 酶两部分组成。当 DNA 上存在两个同向 loxP 序列时,Cre 酶可将两个 loxP 序列之间的 DNA 序列剪除,并促使切口重新连接。据此判断,Cre 酶起到类似(填“限制酶”“DNA 连接酶”或“限制酶和 DNA 连接酶”)的作用,作用于 DNA 中的 键。
(2)NK 细胞由 细胞分化而来,其非特异性免疫作用属于机体抵御病原体攻击的第 道防线。
(3)将 Cre 基因插入 NCR1 中的目的是。
(4)将 Cre 小鼠与 Flox 小鼠杂交,若要从子代中筛选出“NK 特异性 CD226 基因敲除鼠”,应选择基因型为(用 Cre/+、+/+、f/+、f/f 表示)的小鼠。
五、归纳总结
一条主线串到底:一株绿藻 →(黑格曼/纳格尔)一个光门控通道 →(戴塞洛斯)一种光遗传学工具 → 一类疾病(如视网膜色素变性)的新疗法。 两个关键词:“遗传”决定装上光敏蛋白,“光”决定 按下按钮。
六、课后作业
1.完成材料中第 7 题(无缝克隆与无标记耐盐植株)与第 10 题(LSDV 减毒疫苗),体会 Cre-loxP 的定量分析与实验设计。
2.用一句话分别说明“光遗传学”中“光”和“遗传”各起什么作用;并简述光遗传学相比电刺激、药理手段的两点优势。

